
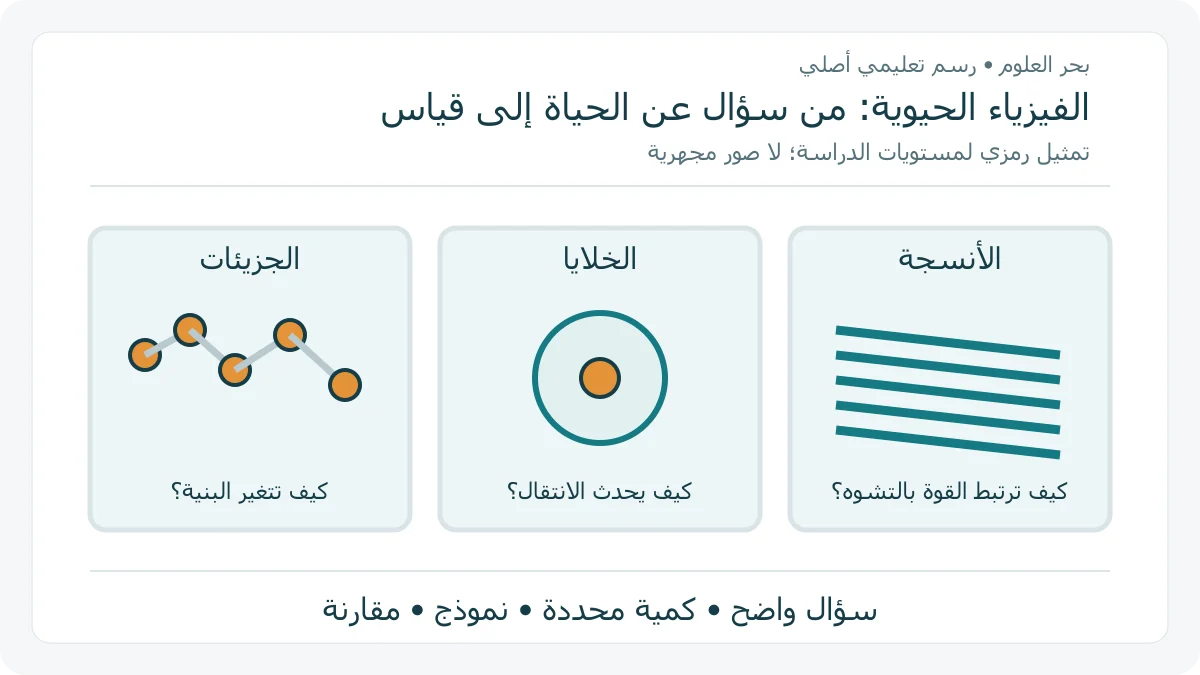
الفيزياء الحيوية مجال يستخدم نظريات الفيزياء وطرائقها لفهم الأنظمة الحية. يربط أسئلة علم الأحياء بالقياس والتحليل الكمي، من الجزيئات والخلايا إلى الأنظمة الأكبر، بمشاركة تخصصات متعددة. [1]
الخلاصة السريعة
الفيزياء الحيوية مجال يستخدم نظريات الفيزياء وطرائقها لفهم الأنظمة الحية. يربط أسئلة علم الأحياء بالقياس والتحليل الكمي، من الجزيئات والخلايا إلى الأنظمة الأكبر، بمشاركة تخصصات متعددة. [1]
- تشمل موضوعات المجال حركة الجزيئات والبنى واتصال الخلايا، وتستعمل التجربة والمحاكاة. [1]
- لنموذج مستقل متوازن على محور واحد من الصفر: متوسط الإزاحة صفر، و RMS يساوي جذر 2Dt؛ لا انجراف في الفرضية. [3]
- في مثال D يساوي 0.25 ميكرومتر²/ثانية، يعطي زمنان 2 و 8 ثوانٍ RMS مقداره 1 و 2 ميكرومتر.
- أرقام المنحنى افتراضية بلا حدود أو حواجز؛ RMS وصف للمجموعة، وليس موقع كل جزيء.
- البنى والأغشية والتنظيم تجعل الأنظمة الحية أكثر تفصيلًا؛ قد نحتاج نماذج أخرى لوصفها. [2]
ما السؤال الفيزيائي داخل الظاهرة الحيوية؟
تدرس الفيزياء الحيوية مثلًا حركة الجزيئات، وبنى البروتينات، واتصال الخلايا، وتستعمل أدوات التجربة والمحاكاة. [1] هذا وصف لمجال الدراسة، وليس حصرًا في جهاز تصوير أو تخصص علاجي واحد.
لنفترض سؤالًا تعليميًا: «هل تنتشر المواقع بعيدًا عن نقطة البداية كلما طال الزمن؟». نحتاج تعريف الموقع والزمن ومجموعة الملاحظات قبل رسم نتيجة. سؤال مختلف، مثل «ما المواد الداخلة في تفاعل؟»، يحتاج كميات أخرى؛ قد تتداخل التخصصات في المشروع نفسه.
يمكن ترتيب السؤال في أربع خانات: ما النظام الذي ندرسه؟ ما الكمية التي نقيسها؟ ما الفرضيات التي نقبلها؟ وما المقارنة التي قد تكشف فشل الوصف؟ هذا ترتيب عمل في مثالنا، وليس قائمة تجعل أي رسم ملون دليلًا بيولوجيًا.
مثال انتشار: المتوسط غير مقدار التشتت
لنموذج حركة عشوائية متوازنة على محور واحد تبدأ من الصفر، المتوسط ⟨x⟩ = 0، لكن متوسط مربع الإزاحة ⟨x²⟩ = 2Dt. الجذر RMS = √(2Dt) يصف انتشار المواقع. يفترض النموذج خطوات مستقلة ولا انجراف اتجاهي. [3]
نختار معاملًا افتراضيًا ثابتًا D = 0.25 μm²/s. عند زمن 2 ثانية، 2Dt = 2 × 0.25 × 2 = 1 μm²، فيكون RMS ميكرومترًا واحدًا. لا يعني هذا أن كل جزيء وصل إلى موضع +1.
عند 8 ثوانٍ يصبح 2Dt = 4 μm²، والجذر 2 ميكرومتر. تضاعف مقدار الانتشار مع أن الزمن زاد أربعة أضعاف. الرسم خط حسابي من هذه الفرضيات، لا مسار جزيء شاهدناه في خلية.
لنفهم الفرق بين الكميتين بمجموعة عددية أصلية: المواقع −2 و −1 و+1 و+2 ميكرومتر متوسطها صفر، لكن متوسط مربعاتها 2.5 ميكرومتر² وجذره نحو 1.581 ميكرومتر. المجموعة مثال للتمييز فقط، وليست عينة تحققت بها معادلة الزمن.
ونموذجنا الحسابي يستبعد الحدود والحواجز، ويحافظ على D نفسه خلال الفترة. لا نقيس السرعة بقسمة RMS على الزمن ثم ننسبها إلى مسار منتظم؛ الإزاحة المميزة للمجموعة تختلف عن طول الرحلة الفعلي.
ما الذي يتغير عند الانتقال إلى خلية حقيقية؟
تتضمن النماذج الحيوية تركيبًا مكانيًا وتفاعلات وتنظيمًا متعدد المستويات. الأغشية تميز أحجامًا داخل الخلية، وقد يتطلب وصف التفاصيل نماذج مختلفة عن الوصف المستمر البسيط. [2]
لذلك لا نساوي الوسط الافتراضي في منحنى الانتشار بكل موضع داخل الخلية. المثال أجاب عن سؤال واحد بشروط معلنة؛ إضافة حركة موجهة أو حاجز إلى المسألة تستلزم إعادة فحص الوصف.
إذا جمعنا بيانات فعلية مستقبلًا، نقارن ما قيس بالكمية التي تنبأ بها النموذج: متوسط، أم متوسط مربعات، أم توزيع كامل. قد يعطي النموذج رقمًا صحيح الحساب لكنه يجيب عن كمية لم تقس أصلًا.
عند قراءة بحث في المجال، دوّن اسم الكمية ووحدتها، وافصل الرسم الحسابي عن نقاط القياس. بهذا ترى كيف تسهم الفيزياء في سؤال بيولوجي محدد، وتعرف مقدار ما تسمح به البيانات بدل الاكتفاء باسم التخصص.
المصادر ومتابعة القراءة
- الجمعية الفيزيائية الحيوية: تعريف المجال وموضوعاته (يفتح في نافذة جديدة)biophysics.org
- الجمعية الفيزيائية الحيوية: نماذج الأنظمة الحية وحدودها (يفتح في نافذة جديدة)biophysics.org
- MIT: الانتشار والحركة العشوائية على محور واحد (يفتح في نافذة جديدة)ocw.mit.edu
أُعدّ هذا المقال بصياغة عربية أصلية بالاستناد إلى المصادر أعلاه، وهو مدخل تمهيدي إلى الموضوع. اقرأ منهجية المحتوى وحدوده.